
Vol.5 エキスパート版 免疫血栓とDIC
アイコンが表示されている用語は記事内でも解説が確認できます。
用語解説1.Neutrophil Extracellular Traps(NETs)の形成と放出
サマリー
免疫血栓に関与するNETsは、好中球の能動的細胞死(NETosis)により核膜・細胞膜破綻が起こり、核内に収納されていたクロマチンが脱凝縮され、細胞外に放出される現象です。生体侵襲が誘導するネトーシスで放出されたNETsは微生物を認識・捕獲し、免疫血栓を形成します。免疫血栓は侵襲の原因である微生物、
PAMPs
PAMPs:pathogen-associated molecular patterns
病原体関連分子パターン。非自己(リガンド)としてPRRsに作用する。
/
DAMPs
DAMPs:damage-associated molecular patterns
ダメージ関連分子パターン。変容した自己(リガンド)としてパターン認識受容体(pattern recognition receptor; PRRs)に作用する。
を封じ込めて殺菌・排除し、組織損傷を侵襲局所にとどめて修復する役割を担っています。
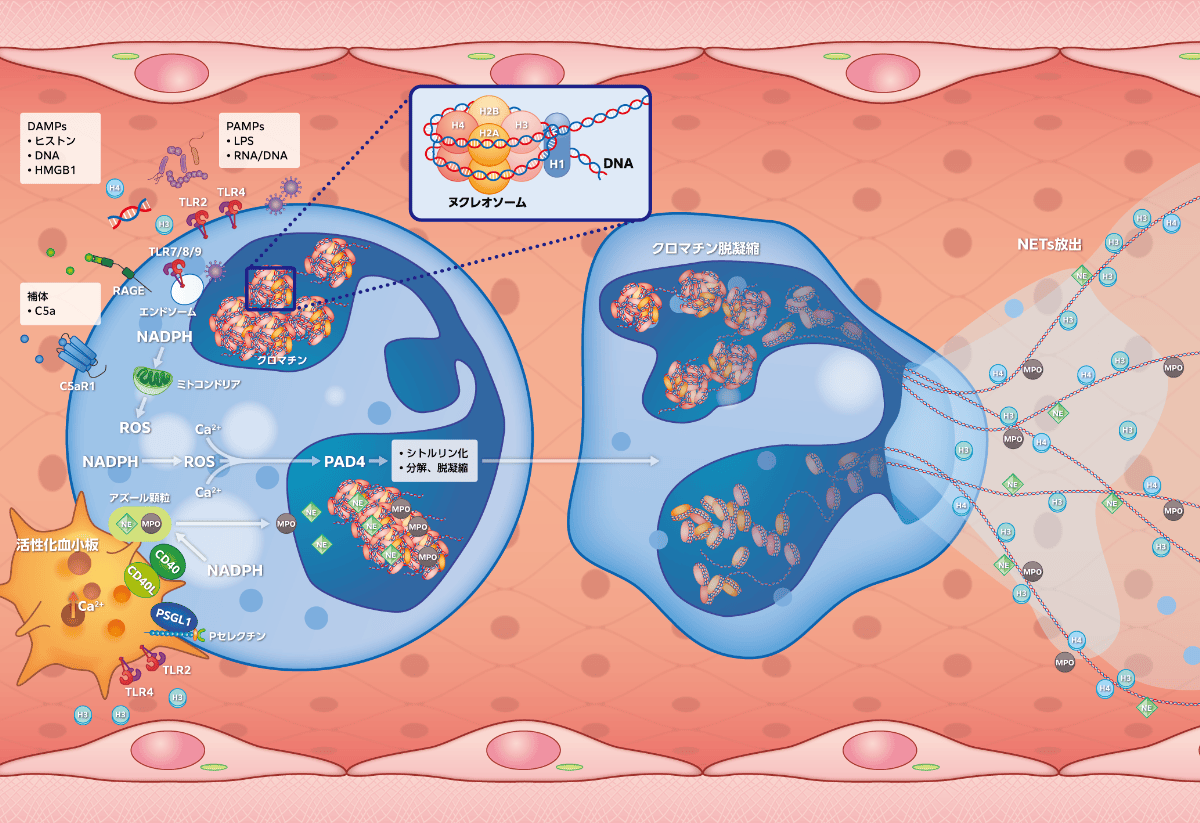
免疫血栓(immunothrombosis)の形成には好中球が放出するNETsが深く関与しています。ここでは、免疫血栓の病態生理を理解するためにNETsの放出機序を解説します。NETs 放出の理解に必要なヌクレオソーム構造は Vol.1(ヒストンモデルによる止血機序) で解説したので、本稿のヌクレオソーム拡大図とあわせて参照してください。
1)NETsとは何か
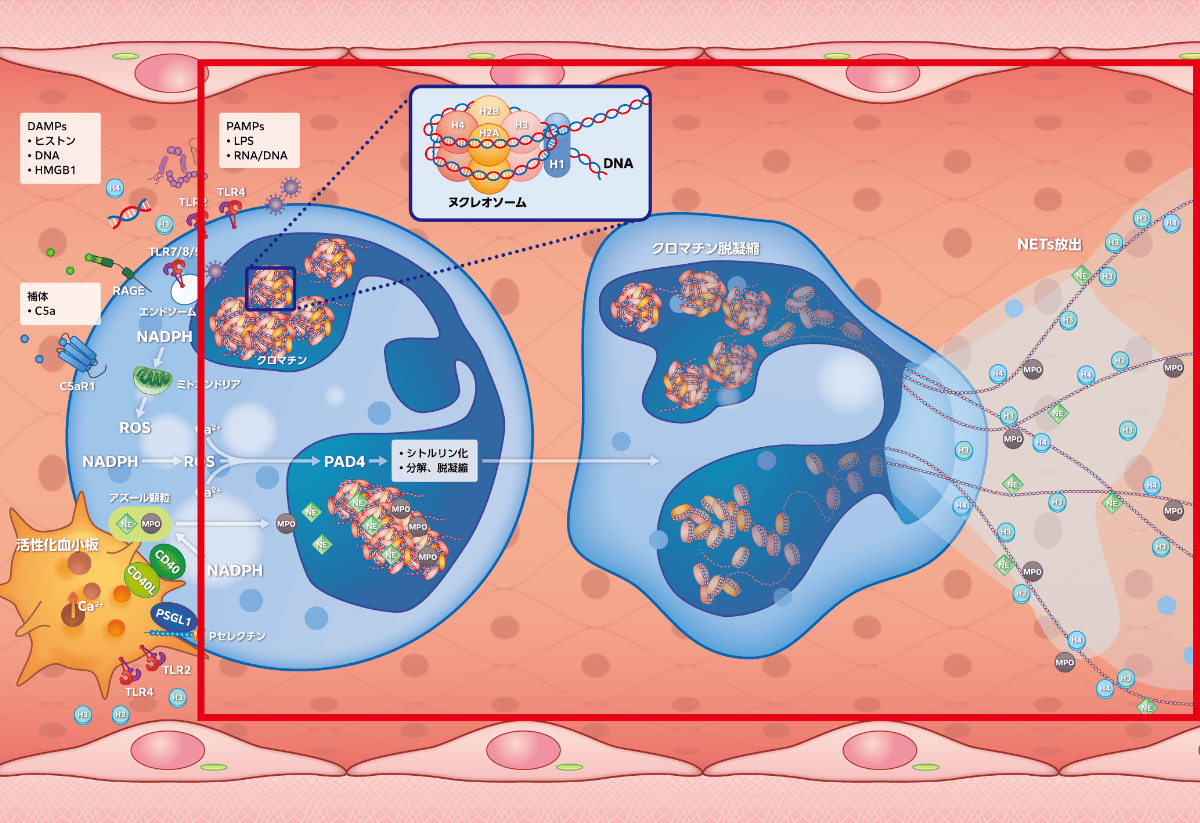
NETsは好中球の能動的細胞死(ネトーシス、NETosis)により核膜・細胞膜破綻が起こり、核内に収納されていたヌクレオソーム集合体のクロマチンが分解(脱凝縮、decondensation)して、クロマチン(DNA)網として細胞外に放出される現象です。細胞死を伴うネトーシスは、3~8時間を要して発現しsuicidal NETosisと呼ばれますが、細胞死が起こらず好中球の走化・貪食・殺菌能を保持しつつ、数分の過程で小胞(vesicle)形成してNETsを放出するvital NETosisも知られています。
2)NETsの放出機序
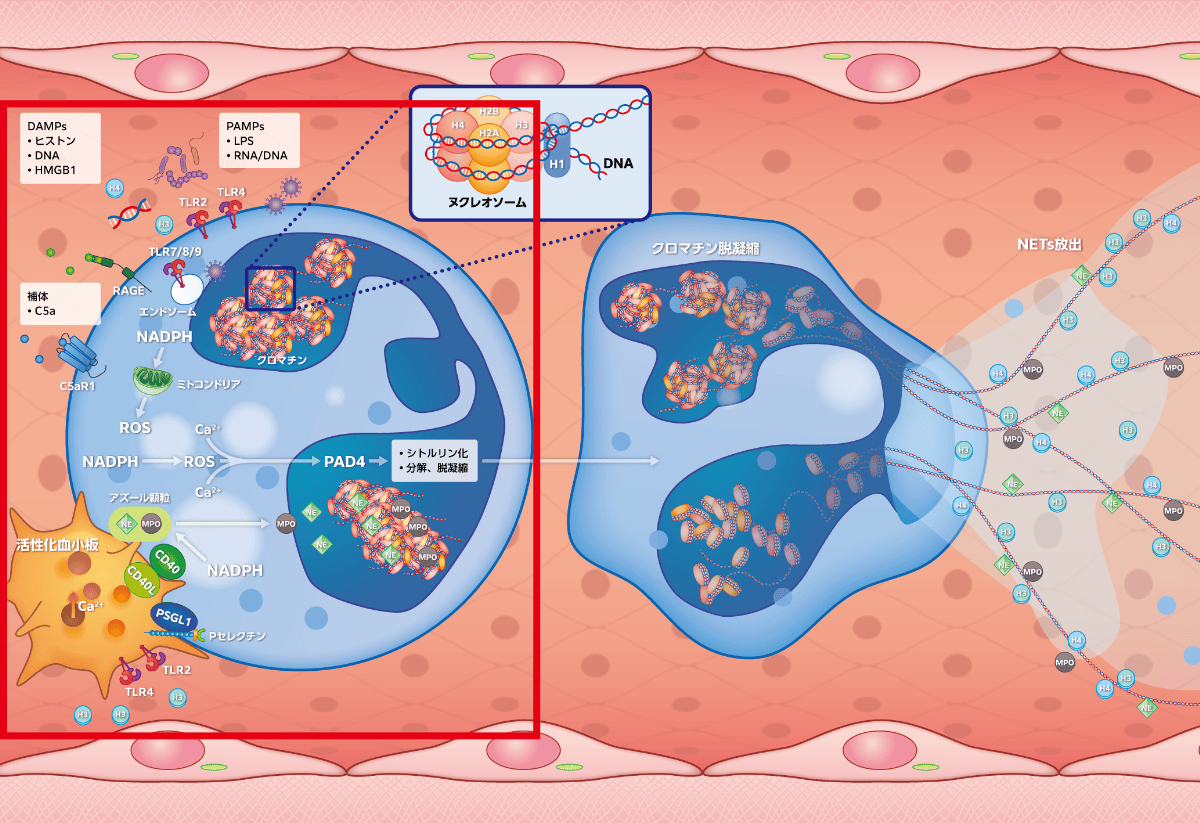
PAMPs(
LPS
LPS:lipopolysaccharide
リポ多糖。グラム陰性菌外膜構成因子でpattern-associated molecular patterns(PAMPs)として作用する。
、ウイルスRNA/DNAなど)、DAMPs(ヒストンH3/H4、自己DNA、
HMGB1
HMGB1:high-mobility group box-1
細胞核内に存在するdamage associated molecular pattern(DAMPs)で、終末糖化産物受容体(RAGE)を受容体とする。
など)、補体C5a(アナフィラトキシン)が、おのおのの受容体である
TLR
TLR:toll-like receptor
パターン認識受容体であり、病原体関連分子パターン(PAMPs)/傷害関連分子パターン(DAMPs)を認識する。
2/4(LPS、ヒストン)、TLR7/8/9(RNA、DNA)、
RAGE
RAGE:HMGB1-receptor for advanced glycation end products
終末糖化産物受容体。HMGB1を認識するPRR(パターン認識受容体)。
(HMGB1)、
C5aR1
C5aR1:C5a type 1 receptor
補体C5a受容体1。
(C5a)に結合します。血小板はTLR2/4にヒストンが結合して細胞内Ca2+濃度上昇に伴い活性化し、PセレクチンとCD40Lを発現し、おのおのが好中球の
PSGL1
PSGL1:P-selectin glycoprotein ligand-1
好中球・単球等に発現し血小板Pセレクチンを認識しこれらの相互作用に関与する細胞接着分子。
とCD40に結合します。リガンド刺激は情報伝達され、ネトーシスに重要な役割を担う
ROS
ROS:reactive oxygen species
活性酸素種。
(スーパーオキシドO2-)産生酵素である
NADPH
NADPH:nicotinamide adenine dinucleotide phosphate
還元型ニコチンアミドアデニンジヌクレオチドリン酸。細胞内の物質合成や抗酸化反応において、電子や水素を供給する還元剤として働く補酵素。
オキシダーゼが産生されます。NADPHオキシダーゼが細胞膜やミトコンドリアに産生誘導したROSは、(1)小胞体(ER)からCa2+を細胞質内移行させて細胞内Ca2+濃度の上昇、(2)
PAD
PAD:peptidylarginine deiminase
ペプチジルアルギニンデイミナーゼ。ヒストンのシトルリン化酵素で、ネトーシスに関連する。
4の核内移行、(3)アズール顆粒膜を傷害して収納されていたエラスターゼ(NE)と
MPO
MPO:myeloperoxidase
好中球ミエロペルオキシダーゼ。アズール顆粒内に存在する。
の細胞内流出・核内移行を促進します。細胞内Ca2+濃度上昇に伴いPAD4は活性化してヒストンをシトルリン化し、シトルリン化で脆弱になったヒストン八量体結合(ヌクレオソーム)をエラスターゼ/MPOが分解してクロマチンの分解・脱凝縮が起こります。脱凝縮でコンパクトに格納されていたクロマチンはバラバラになり、ROSにより傷害された核膜・細胞膜から好中球外へ放出されます。これがNETsの正体ですから、その主体はクロマチンのDNA網にヒストン、エラスターゼ、MPOなどが付着したものと理解できます。さらに、ミトコンドリアDNA、抗菌活性をもつラクトフェリン、ROS、補体成分(C3b、C5aなど)もNETsに付着していることを記憶すると良いでしょう。
3)ネトーシスとNETsの役割
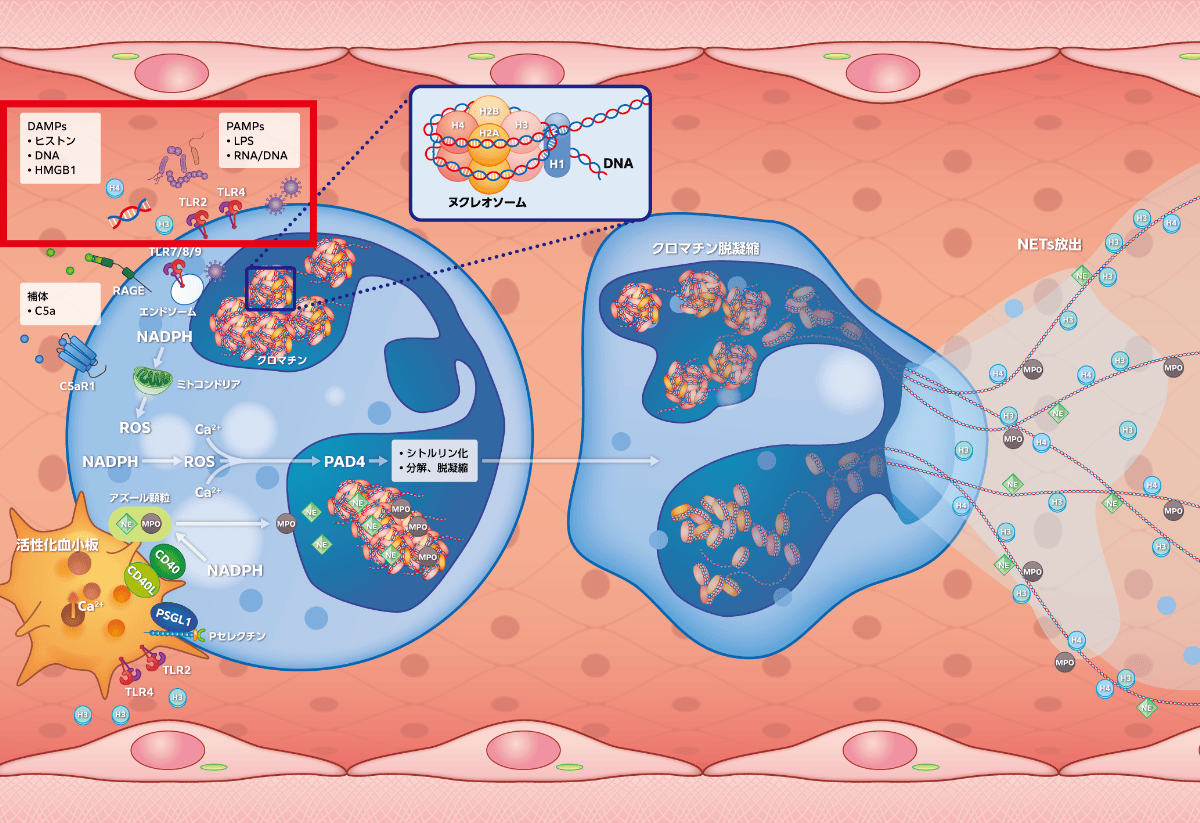
生体侵襲が誘導するネトーシスで放出されたNETsは、(1)細菌、真菌、ウイルス、原虫などの微生物を認識して捕獲し、(2)免疫血栓を形成します。免疫血栓は(3)血栓内へ微生物に加えてPAMPs/DAMPsを封じ込めて播種・拡散を防止し、(4)侵襲による組織損傷を侵襲局所に限局して修復し、侵襲の原因である微生物、PAMPs/DAMPsを殺菌・排除する役割をもっています。
2.免疫血栓形成とDIC
サマリー
免疫血栓の形成には、侵襲局所の血小板活性化、凝固亢進、抗凝固機能の制御、線溶反応の制御などの局所炎症亢進が関与しています。一方、細菌は直接的・間接的にプラスミンを産生して免疫血栓を溶解し、DNaseを分泌してNETsを分解するほか、フィブリン網をまとって好中球からの攻撃を防ぎます。生体侵襲と免疫血栓による生体防御反応の均衡が崩れ、局所免疫血栓が破綻すると微生物やPAMPs/DAMPsが全身に拡散してしまいます。これらを封じ込めるために全身性炎症反応症候群(SIRS)を伴うDICが発症します。
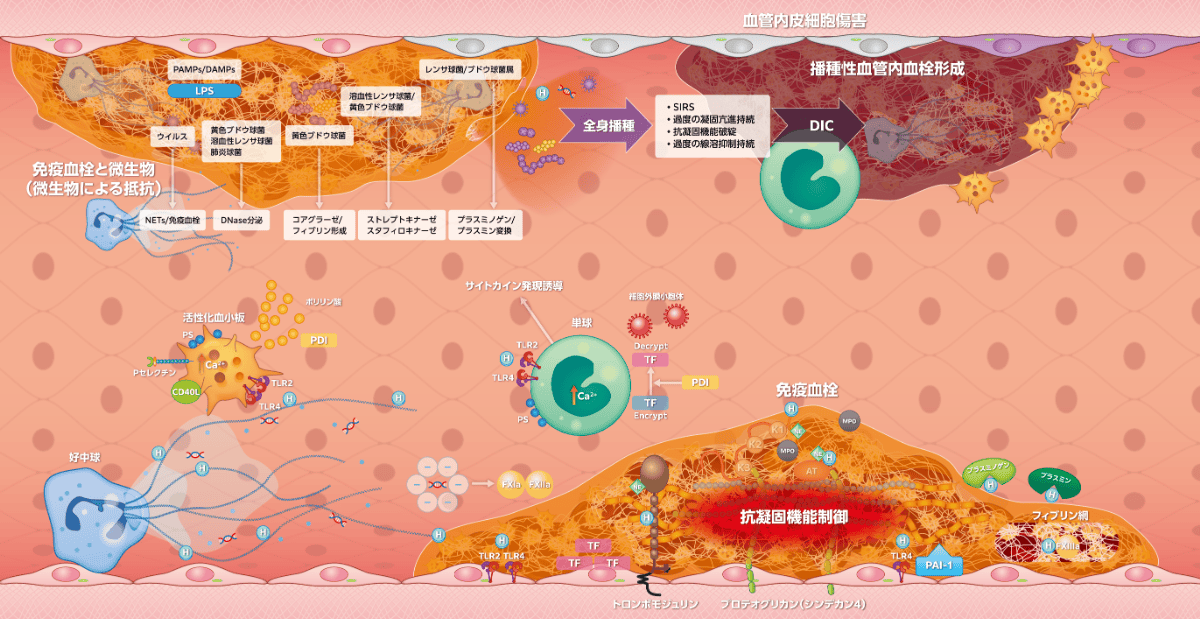
免疫血栓形成にはNETsのヒストンが深く関与しますが、詳細はVol.1-図2で述べたヒストンモデルを参照してください。(Vol.1-図2参照)
 Vol.2 エキスパート版ページを開く
1)免疫血栓形成
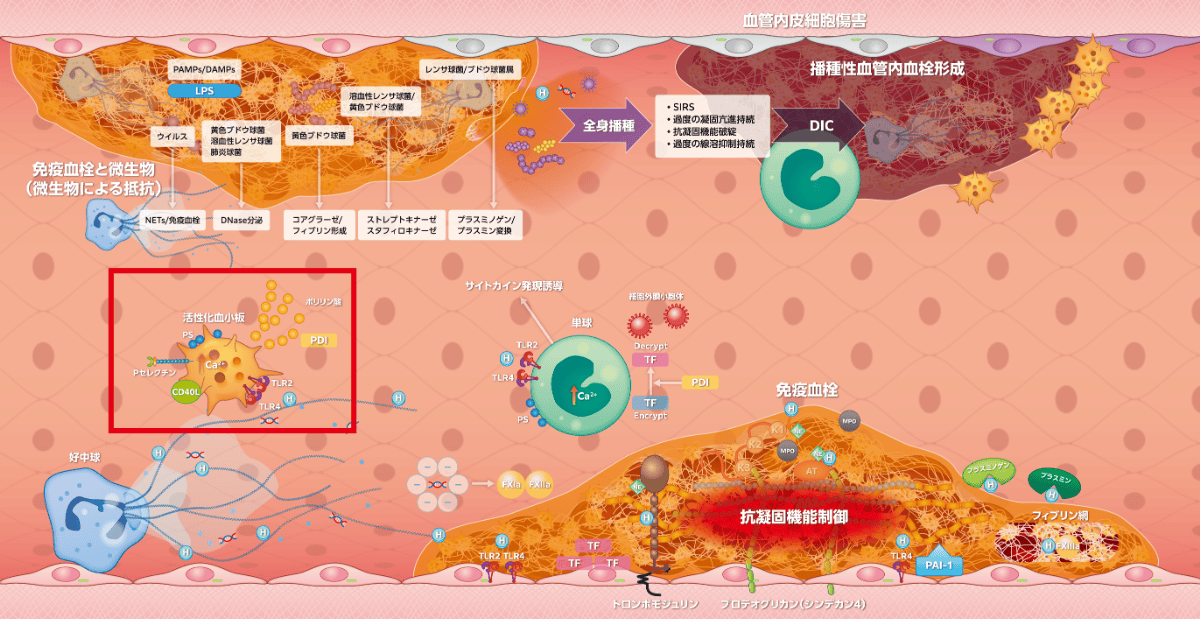
(1)血小板活性化
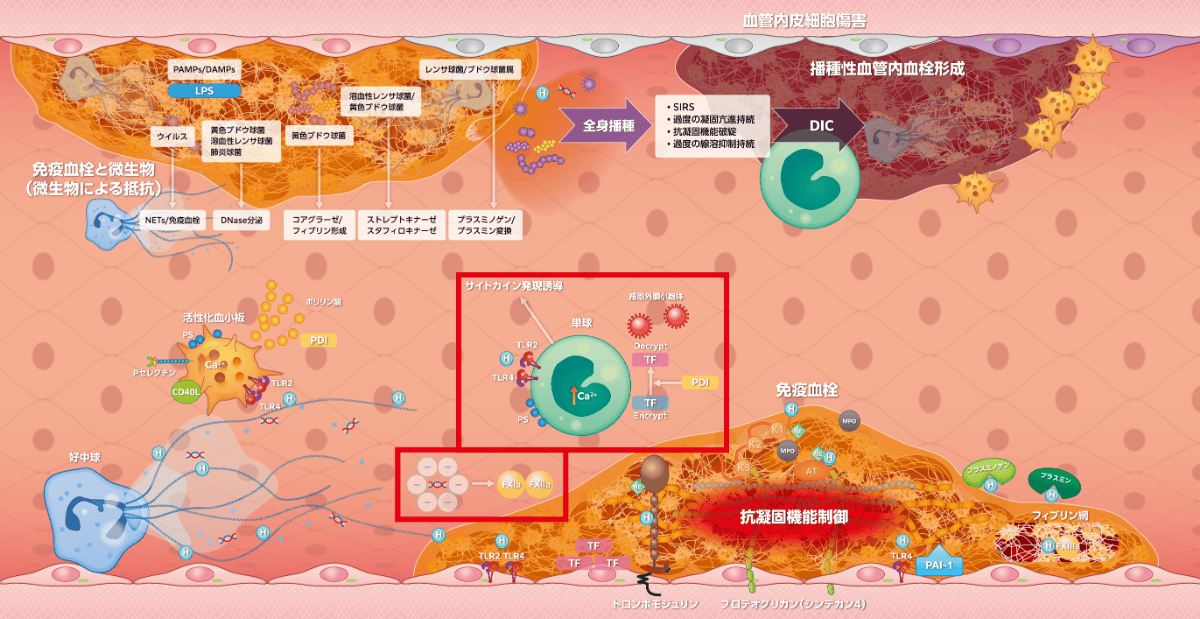
ヒストンは血小板TLR2/4に作用しPセレクチンとCD40Lを発現し、細胞内Ca2+濃度上昇で血小板が活性化します。細胞内Ca2+濃度上昇で活性化したスクランブラーゼは細胞内フォスファチジルセリンを膜表面に露出し、血小板凝集能亢進と同時に血小板上でテナーゼ複合体とプロトロンビナーゼ複合体によるトロンビン産生が飛躍的に増加します。活性化血小板と好中球のNETs放出の関係は前述しました(Vol.5-図1)。
(2)凝固亢進
・単球活性化
ヒストンは単球TLR2/4に作用し、組織因子発現誘導、炎症性サイトカイン発現誘導(
TNF
TNF:tumor necrosis factor
腫瘍壊死因子。炎症性サイトカインの一種。
-α、
IL
IL:interleukin
インターロイキン。
1β、IL6など)と放出、細胞内Ca2+濃度上昇によるスクランブラーゼ活性化とフォスファチジルセリン表出を起こします。発現した組織因子は不活性(encrypted
TF)ですが、フォスファチジルセリンと活性化血小板が放出した
PDI
PDI:protein disulfide isomerase
血小板活性化に伴い放出され、単球の不活性型の組織因子(TF)の活性化作用をもつ。
により活性型(decrypted TF)となり、細胞外膜小胞体として放出されます。
・血管内皮細胞活性化
ヒストンは血管内皮細胞TLR2/4に作用し、組織因子の発現を誘導し、細胞内Ca2+濃度上昇によるスクランブラーゼ活性化とフォスファチジルセリン表出を起こします。炎症性サイトカイン発現誘導と放出、そして接着分子(
ICAM-1
ICAM-1:intercellular adhesion molecule-1
細胞接着分子-1。免疫グロブリンスーパーファミリーに属するグリコプロテイン。
、
VCAM-1
VCAM-1:vascular cell adhesion molecule-1
血管細胞接着分子-1。免疫グロブリンスーパーファミリーに属するグリコプロテイン。
)発現も誘導し白血球と血管内皮細胞の相互作用が促進されます。
・内因系凝固反応亢進
陰性に荷電しているDNAはFXIIを活性化し、活性化血小板が放出するポリリン酸がFXII、FXIを活性化して内因系凝固反応が亢進します。FXIIaが凝固反応のみならず、カリクレイン/キニン経路と補体経路反応の活性化に関与することはVol.3-図2で詳述しました。(Vol.3-図2参照)
 Vol.3 エキスパート版ページを開く
(3)抗凝固機能の制御
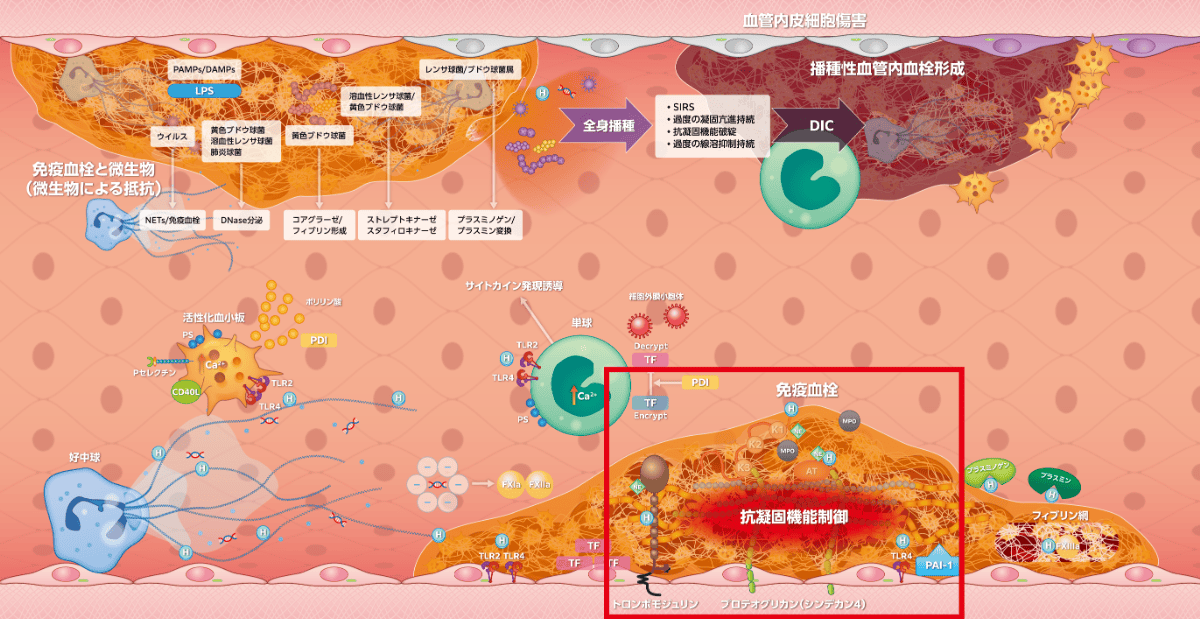
エラスターゼは、アンチトロンビン、トロンボモジュリン、
TFPI
TFPI:tissue factor pathway inhibitor
組織因子経路インヒビター。TF/FVIIa、FVa、FXaを阻害する血液凝固制御因子。
をそのプロテアーゼ作用により非特異的に分解し、これらの凝固制御機能を抑制し、MPOはこれらを酸化修飾して機能を阻害します。ヒストンはTFPIと結合・中和し、グリコカリックスを介したアンチトロンビン作用を制御し、血管内皮細胞のトロンボモジュリン発現を低下させます。
(4)線溶反応の制御
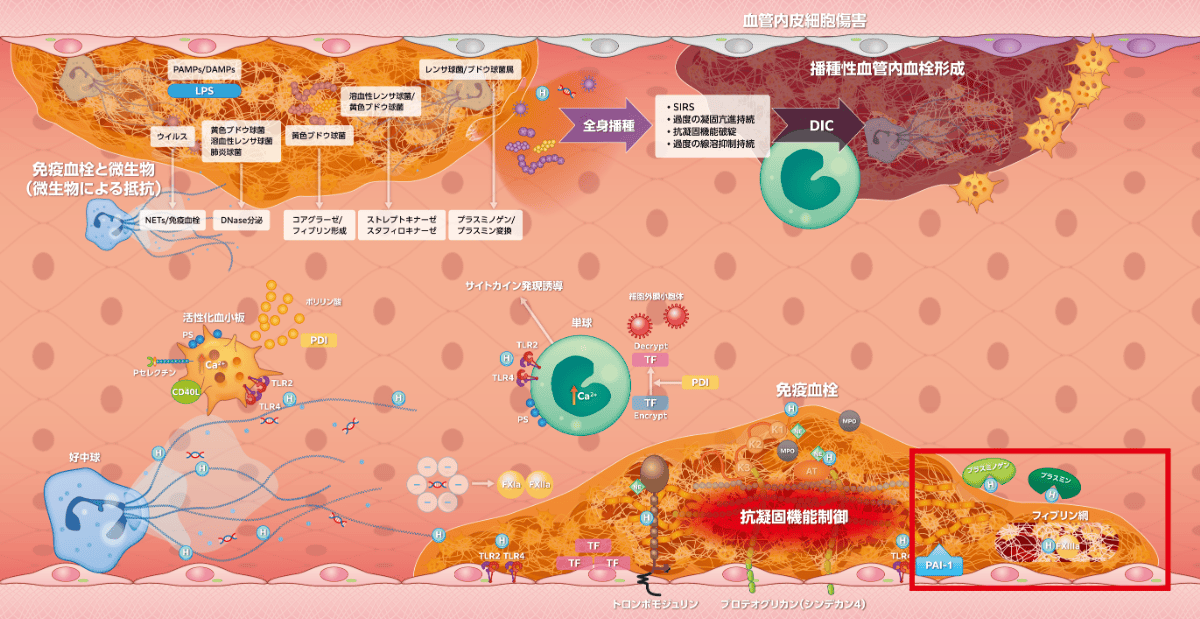
Vol.1-図2-4で述べたように、ヒストンはFXIIIaによりフィブリンと共有結合し
t-PA
t-PA:tissue-type plasminogen activator
組織型プラスミノゲンアクチベータ。プラスミノゲンをプラスミンに変換する線溶系の開始因子。
によるフィブリンへの線溶作用を制御し、フィブリン線維径を増すことによりフィブリン血栓の安定化・堅牢化に関与しています。さらに、血管内皮細胞のTLR4を介した
PAI-1
PAI-1:plasminogen activator inhibitor-1
t-PAと結合して不活性化する線溶抑制因子。
発現誘導作用、プラスミノゲン・プラスミンへ結合し線溶反応を阻害する作用もあります。
2)微生物と免疫血栓の攻防
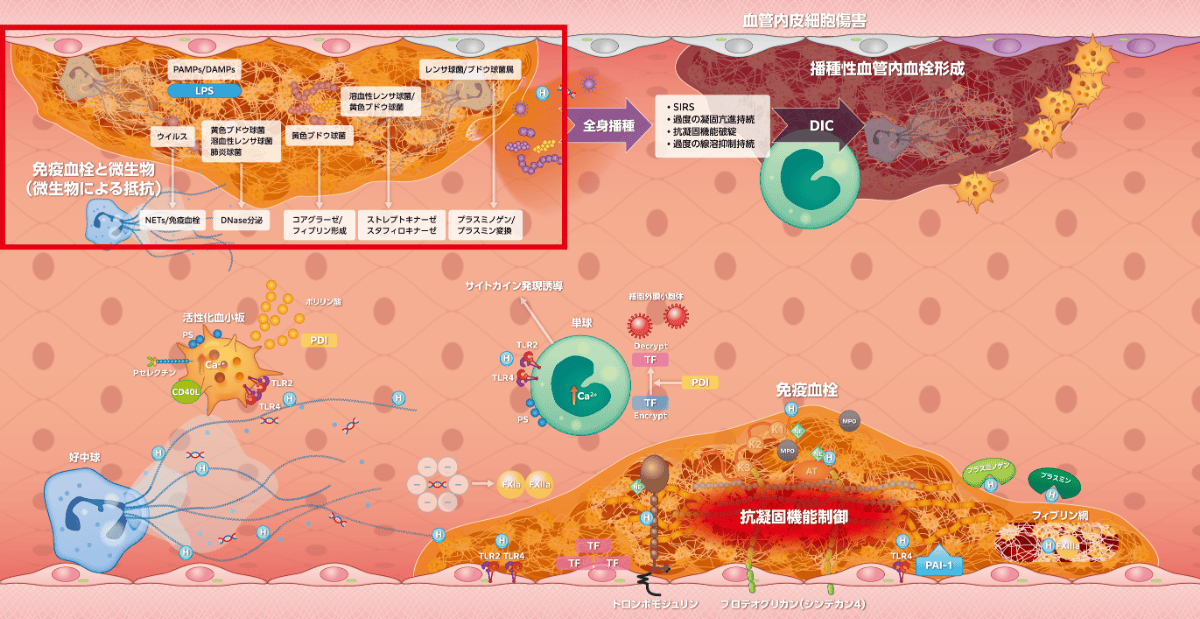
細菌(レンサ球菌、ブドウ球菌属など)は、宿主プラスミノゲン受容体を自身の表面に結合し、t-PAを利用してプラスミンを産生します。溶血性レンサ球菌や黄色ブドウ球菌が産生するストレプトキナーゼ、スタフィロキナーゼは、プラスミノゲンと複合体を形成しプラスミンを産生する非プロテアーゼ型プラスミノゲンアクチベータです。黄色ブドウ球菌はコアグラーゼを分泌して宿主プロトロンビンを活性化し、形成したフィブリン網で自身を被覆して好中球・マクロファージの貪食から逃れています。多くの細菌(黄色ブドウ球菌、溶血性レンサ球菌、肺炎球菌など)は細菌性DNaseを分泌してNETsを分解する作用をもっています。ウイルスのNETs形成抑制、免疫血栓抑制作用が知られていますが、その詳細な機序は研究途上です。
3)DICの発症
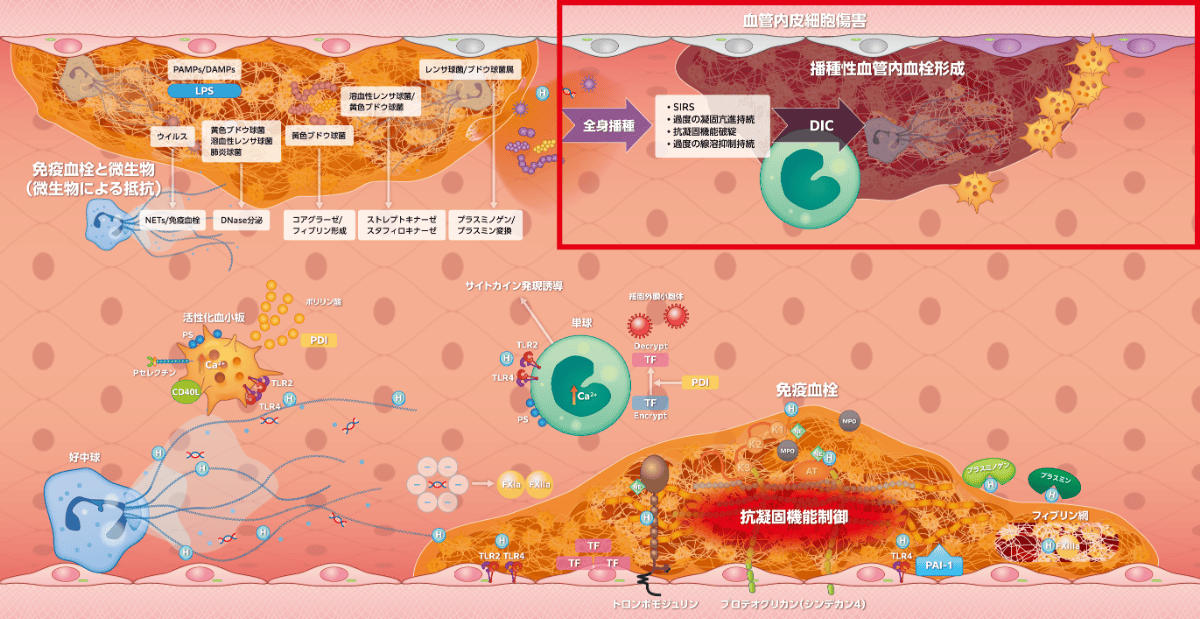
生体侵襲と免疫血栓による生体防御反応の均衡が崩れると、免疫血栓内の微生物やPAMPs/DAMPsが全身に拡散し、それらを封じ込めるためには播種性の血栓形成が必要となりDICが発症します。免疫血栓は炎症を伴う凝固亢進、抗凝固機能制御、線溶反応抑制で生体侵襲を局所に限局し、細胞・組織損傷を修復して生体恒常性を維持する自然免疫反応です。しかし、重度生体侵襲では過剰反応した自然免疫反応が、病的自然免疫反応となりDICが発症します。DICはSIRSを伴う病的免疫血栓であり、過度の凝固亢進持続、抗凝固機能破綻、過度の線溶抑制持続が播種性血管内血栓を形成します。
関連書籍:丸藤 哲.あなたもはまるDIC―まったく新しいDIC学への誘い.東京:三輪書店;2023.
2026年9月作成(審J2609137)